Visualizzazione post con etichetta chimica. Mostra tutti i post

lunedì 2 settembre 2013

Genetica classica: Sutton e Morgan

Nonostante l'impegno di Mendel, i risultati delle sue ricerche non furono considerati dai suoi contemporanei; morì prima di sapere che i frutti del suo lungo lavoro sono stati ripresi da altri studiosi. In particolare, due figure molto importanti dedicarono lungo tempo all'osservazione del processo meiotico con l'intento di scoprire il meccanismo di trasmissione ereditaria dei caratteri:
  • Siamo agli albori del ventesimo secolo (1902) quando Walter Sutton, studiando la produzione di gameti nei maschi di cavalletta, notò che i cromosomi si somigliavano e si raggruppavano a coppie negli individui e che queste coppie segregavano durante la seconda divisione meiotica: stiamo parlando dei cromosomi omologhi, presenti in tutte le cellule diploidi di un organismo.
  • Sutton dedusse che i cromosomi fossero i geni di cui parlava Mendel mentre i due alleli componenti il genotipo giacevano sui cromosomi omologhi. Da questo deriva, inoltre, che la terza legge di Mendel vale nel caso in cui i geni presi in considerazione non appartengano alla stessa coppia di cromosomi omologhi: se due geni giacciono sullo stesso cromosoma è impossibile che durante la meiosi vengano separati (se non per crossing over).
  • Studi successivi condotti su Drosophila melanogaster non si limiteranno a confermare le ipotesi di Sutton: analisi specifiche condotte sui cromosomi omologhi assicurano che questi sono uguali tra loro (mi riferisco ai caratteri genici, non alla modalità, ossia agli alleli) in tutti gli esseri viventi della stessa specie tranne una coppia: i primi sono i cosiddetti autosomi mentre i secondi sono conosciuti come cromosomi sessuali, proprio perchè determinano il genere dell'individuo.
  • La coppia dei cromosomi sessuali comprende sempre un cromosoma detto X mentre l'omologo può essere anch'esso X (uguale) oppure diverso: si tratta di un cromosoma più piccolo, contenente meno geni denominato cromosoma Y. Le combinazioni possibili risultano XX e XY e determinano il sesso dell'organismo: quello femminile deriva da XX e quello maschile da XY. Questo va inteso "nella maggior parte dei gruppi animali": vale, ad esempio, per tutti i mammiferi (e l'uomo) ma non per gli uccelli (infatti gli uccelli XX sono maschi e gli XY sono femmine).
Cariotipo umano maschile e femminile: la coppia 23 si riferisce ai cromosomi sessuali (diversi nel maschio, ossia XY; uguali nella femmina, cioè XX). Tutte le altre coppie (1-22) sono uguali per entrambi, o meglio, autosomiche.
  • Parlando dei geni presenti nei cromosomi, conosciuti come caratteri legati al sesso, non essendo sempre uguali tra loro, non sempre rispettano il rigore delle leggi mendeliane: si tratta dei risultati delle ricerche di Thomas Hunt Morgan (1909). Studiando il comportamento del carattere "colore occhi" nella drosophila melanogaster, infatti, Morgan scoprì che il gene corrispondente si trova solamente sul cromosoma X.

Illustrazione che spiega gli incroci di Morgan

mercoledì 29 maggio 2013

Le eccezioni alle 3 leggi di Mendel

Gli studi e i risultati di Mendel sono stati fondamentali per gli studi della genetica di inizio 1900, il periodo della genetica classica. Tuttavia, si è anche constatato che le leggi di Mendel non sono sempre rispettate del tutto perchè i meccanismi di trasmissione dei caratteri non erano così semplici come da lui ipotizzati; questo è dovuto in parte alle pressochè nulle conoscenze in proposito e agli strumenti poco sofisticati dell'epoca ma anche alla scelta accurata dei caratteri da analizzare. I principali fenomeni che Mendel ignorava sono oggi noti come:
  • Mutazioni genetiche: scoperte per la prima volta da Hugo de Vries, consistono nella modificazione del genoma (maggiori informazioni).
  • Dominanza incompleta: fenomeno che avviene quando, esaminando un carattere di una specie, gli individui eterozigoti non presentano il fenotipo dominante, come affermava Mendel, e tantomeno quello recessivo, bensì un nuovo carattere fenotipico "intermedio".
Il caso della "bocca di leone"
  • Alleli multipli: se un carattere di una popolazione di individui è determinato da un gene che presenta più di due forme alleliche differenti.
  • Codominanza: quando negli individui eterozigoti per un certo carattere i due alleli si manifestano contemporaneamente nei loro fenotipi omozigoti.
Il caso dei gruppi sanguigni umani, gene dagli alleli multipli: A e B sono dominanti allo stesso modo e 0 è recessivo; gli eterozigoti A0 e B0 manifesteranno rispettivamente il fenotipo A e B mentre gli eterozigoti AB manifestano sia A che B allo stesso modo, ossia il gruppo sanguigno AB.
  • Epistasi: è quel fenomeno dove il particolare genotipo di un carattere dell'organismo inibisce l'espressione di altri geni.
  • Eredità poligenica: i casi in cui un determinato carattere fenotipico di una specie è il risultato delle azioni combinate di due o più geni. Questi caratteri, detti appunto poligenici, si manifestano in genere con lievi differenze fenotipiche tra gli individui: si parla di variazione continua.
La tipica curva della variazione continua: nonostante possano variare i valori, l'andamento rimane sempre "a campana" perchè la maggior parte dei fenotipi sono molto simili.
  • Pleiotropia: quei casi dove, invece, il genotipo di un singolo gene influisce su più caratteri fenotipici di un organismo.
  • Ambiente: ogni carattere fenotipico di un individuo è il risultato dell'interazione tra il genotipo dello stesso e le condizioni ambientali a cui questo è sottoposto (nel senso che il suo fenotipo può variare a seconda dell'ambiente in cui esso si trova).
 
I colori dei fiori della primula variano a seconda della temperatura ambiente: le primule a fiori rosa o rossi sono tipiche nelle montagne ad alta quota mentre i fiori bianchi si trovano in ambienti più caldi.

martedì 28 maggio 2013

La genetica classica: Gregor Mendel e le sue 3 leggi

La genetica classica ha le sue radici negli studi di Gregor Johann Mendel che però non furono subito presi in considerazione: solo agli inizi del 20° secolo alcuni scienziati compresero l'importanza dei suoi studi, ricerche e risultati, frutto di un rigoroso metodo scientifico. Gli studi di Mendel, avvenuti verso la seconda metà del 1800, si basavano sulla trasmissione dei caratteri ereditari, oggetto di studio della scienza che oggi chiamiamo, appunto, genetica. Nonostante le scarse conoscenze della cellula e del corredo genetico, Mendel si concentrò nello studio dei caratteri delle piante di pisello.

Le piante di pisello con cui lavorava Mendel: per evitare l'autoimpollinazione quando non necessario, Mendel rimuoveva gli stami (organi maschili), operando, quindi, secondo selezioni scrupolose sulla fecondazione degli organismi

  • Ora, prima di esporre i risultati degli esperimenti di Mendel, è meglio spiegare e definire alcuni concetti:
  1. Mendel scelse le piante di pisello per i suoi studi e presentavano grossi vantaggi: economico, brevi tempi di riproduzione e presenza di ambedue gli organi riproduttivi (antere e ovario) che permettono al fiore di autoimpollinarsi.
  2. Mendel focalizzò i suoi studi considerando un carattere alla volta (es. colore del fiore) nelle sue varie forme (fiore bianco, fiore viola): si tratta di ciò che è osservabile del carattere, ossia il fenotipo.
  3. Gli esperimenti di Mendel partivano da organismi che, considerando quel carattere, trasmettevano nei figli sempre quello e non ne comparivano altri: li chiamò linee pure.
  4. Mendel pensava che ogni carattere fenotipico fosse trasmesso alle generazioni seguenti mediante unità di informazioni che chiamò "unità ereditaria": oggi sappiamo che si chiamano geni e che corrispondono a sequenze di DNA codificanti.
  5. Inoltre, dato che i geni possono portare forme diverse di uno stesso carattere, chiamò queste forme alternative "fattori" e che un gene fosse costituito da due "fattori": oggi sono conosciuti come alleli e sarebbero la singola informazione genica presente sul singolo cromosoma; mentre il risultato dell'espressione genica è dato dall'interazione tra lo stesso gene sui cromosomi omologhi.
  6. Anche se nel fenotipo risulta un solo carattere, gli alleli sono comunque presenti nell'assetto genetico o genotipo. Questo individua due grandi classi di individui: quelli con il genotipo costituito da due forme alleliche uguali, detti omozigoti, e quelli con alleli diversi, gli eterozigoti. In particolare, gli omozigoti coincidono con le linee pure di Mendel.
Differenza tra genotipo e fenotipo: il carattere "giallo" prevale sul carattere "verde" quindi, anche se il genotipo degli individui conterrà il carattere "verde", il risultato visibile sarà il fenotipo "giallo".
  • Adesso enunciamo le 3 leggi di Mendel, spiegando in cosa consistono e secondo quali dati Mendel si basò per formularle:
  1. Legge della dominanza: l'accoppiamento di due linee pure (generazione P) per quel carattere ha dato origine a una generazione F1 che manifesta interamente il carattere fenotipico di uno dei due genitori; questo carattere è detto dominante mentre quello che sembra come scomparso si chiama recessivo.
  2. Legge della segregazione o della disgiunzione: autoimpollinando un individuo della generazione F1, ricompariva nella generazione F2 il carattere recessivo presente nell'altro genitore per il 25% (rapporto 3:1); significa che gli alleli di un gene provengono uno dal padre e l'altro dalla madre e che nella formazione dei gameti si separano.
  3. Legge dell'indipendenza dei caratteri o dell'assortimento indipendente: considerando contemporaneamente due linee pure per due caratteri (generazione P) e autoimpollinando un individuo della generazione F1, le combinazioni possibili tra i caratteri si manifestavano in proporzioni definite (rapporto 9:3:3:1); in sostanza, gli alleli di singoli caratteri segregano "per conto loro".
Spiegazione della seconda e terza legge di Mendel: le varie combinazioni sono state ricavate mediante questa tabella conosciuta come quadrato di Punnett

martedì 21 maggio 2013

La proteomica

Il proteoma è l'insieme delle proteine prodotte dalle cellule di ogni organismo: dato che le proteine prodotte sono maggiori dei geni da cui sono state codificate, il proteoma è più vasto del genoma. Inoltre, dato che le proteine prodotte in un organismo variano tra le cellule di tessuti differenti ma sono praticamente le stesse fra organismi della stessa specie, anche il proteoma, solitamente, varierà da tessuto a tessuto, ma non da specie a specie.
  • Lo studio e il confronto tra proteomi dei vari organismi ha dato vita ad un altro ramo della scienza: trattasi della proteomica, un settore della biologia piuttosto recente, il cui scopo è quello di trovare le relazioni tra geni e proteine, oltre all'individuazione dei processi che stanno alla base della regolazione genica di una cellula e delle cause delle anomalie genetiche.
  • La proteomica si serve frequentemente, più che del proteoma, del trascrittoma di una cellula, ossia l'insieme degli mRNA presenti nel suo citoplasma: è più facile individuare quest'ultimo.
  • La proteomica è riuscita a suddividere le proteine a seconda della loro funzione; esse saranno presenti in diverse quantità a seconda dell'utilità allo scopo del tessuto a cui appartiene la cellula. Le proteine svolgono principalmente queste funzioni:
  1. Struttura: la serie di proteine che costituiscono i tessuti principali, come la cheratina.
  2. Motore: sono quelle che permettono il movimento trasformando in energia meccanica l'energia chimica, quale la chinesina.
  3. Difesa: sono proteine coinvolte nella difesa dell'organismo da individui esterni (virus, batteri, protozoi, funghi...), quali gli anticorpi.
  4. Trasporto: quelle proteine responsabili del trasporto di vari composti per l'organismo, come l'emoglobina.
  5. Enzima: tutte le proteine che agiscono da catalizzatori dei processi biologici degli organismi; sono numerosissime, infatti esiste un ulteriore divisione.
  6. Regolazione: sono quelle impiegate nella regolazione genica (attivatori, repressori...).
  7. Trasferimento segnale: sono proteine che svolgono un ruolo di riconoscimento di altre molecole, ad esempio le proteine di membrana.
  • Per identificare le proteine, gli studiosi impiegano due diverse tecniche di laboratorio successive: l'elettroforesi bidimensionale su gel, detta anche elettroforesi 2D, e la spettrometria di massa.
  • L'elettroforesi 2D prevede un'iniziale separazione delle proteine sfruttando la loro diversità di cariche a un determinato PH, quello del gel nel tubo in cui sono inserite. Successivamente, il tubo è posizionato su una lastra di gel contenente un composto di nome dodecilsolfato (SDS) che ricopre le proteine, denaturandole; quest'ultime sono poi disposte secondo la loro massa.
  • Adesso, mediante la spettrometria di massa, si è in grado di individuare la funzione e l'identità della proteina: infatti, mediante specifici enzimi (denominati proteasi), queste sono separate in più catene peptidiche per poi essere analizzate con lo spettrometro. Scoprendo gli amminoacidi di cui è composta, si potrà risalire ai codoni del filamento di mRNA che l'ha tradotta e, infine, anche al gene codificante; il tutto mediante l'ausilio di specifici e sofisticati programmi computerizzati.

Focus On! Corpi di Barr

I corpi della cromatina sessuale, meglio conosciuti come corpi di Barr, non sono altro che cromosomi X altamente spiralizzati in eterocromatina: in pratica sono cromosomi X "silenziati", con quasi tutti i geni inattivi. Le principali informazioni frutto di numerose ricerche sono queste:
  • In tutte le cellule degli umani, eccezion fatta per gli individui affetti da mutazioni, le femmine hanno due cromosomi X: uno rimane attivo, ma l'altro risulta essere un corpo di Barr; nei maschi, l'unico cromosoma X è attivo. Quindi, l'espressione genica del cromosoma X è uguale in maschi e femmine.
  • Negli organismi affetti da mutazioni genomiche su cromosomi sessuali, sembra che il numero di corpi di Barr equivalga al numero di cromosomi X presenti meno uno: in pratica, in ogni essere umano, è impiegato un solo cromosoma X.
  • Nelle femmine di tutti i mammiferi, il cromosoma X che diviene corpo di Barr è scelto casualmente tra quello materno o quello paterno ma solo quello rimarrà sempre inattivo.
  • Il meccanismo di inattivazione avviene mediante l'espressione genica di una regione del cromosoma X che rimarrà attiva solo in quello destinato a "silenziarsi" e si chiama centro di inattivazione dell'X (Xic): essa è la sede di principalmente quattro geni. Uno di essi produce un mRNA non traducibile, il trascritto specifico dell'X inattivo (Xist), che invece si dispone intorno al futuro corpo di Barr, come se lo isolasse dall'attività cellulare in una "gabbia".
Figura
                        9

Sitografia (per maggiori informazioni):

martedì 14 maggio 2013

Geni omeotici e genetica dello sviluppo

Con genetica dello sviluppo si intende un ramo della scienza (o meglio, della genetica) con oggetto di studio gli organismi pluricellulari, o meglio, i processi di sviluppo che coinvolgono gli individui dalle prime fasi di vita all'età adulta. Una volta originato lo zigote, che è dotato del genoma necessario, esso continua a duplicarsi dando vita a numerose cellule che mano a mano si differenziano sempre più, silenziando il resto del genoma non più funzionale al suo scopo.
  • Lo sviluppo embrionale degli organismi pluricellulari è stato studiato principalmente sugli animali: in particolare, sulle specie Drosophila melanogaster (moscerino della frutta), Mus musculus (un topo), Danio rerio (un pesce di piccole dimensioni) e Caenorhabditis elegans (un nematode).
Il verme nematode Caenorhabditis Elegans e la Drosophila melanogaster, alias moscerino della frutta.
  • Per tutto lo sviluppo embrionale degli animali persiste un processo detto regolazione genica differenziale: in pratica, dei fattori di regolazione agiscono sui geni attivandoli o disattivandoli a precisi tempi scanditi, definendo così le caratteristiche fisiche peculiari dell'organismo. I fattori di regolazione, una volta compiuta la loro missione, ne attivano altri che intervengono nelle fasi successive.
  • Ora, il processo di sviluppo embrionale animale (qui basato su Drosophila melanogaster) si compone principalmente di 4 fasi:

embrione di Drosophila in fase 1
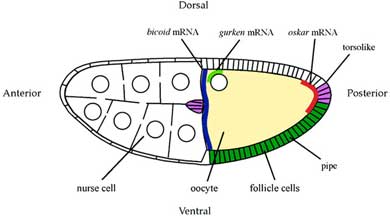
  1. Siamo a livello della cellula uovo quando si attua la distinzione tra estremità anteriore e posteriore; ora, le cosiddette nurse cells (alcune cellule specializzate) attivano dei geni dei bicoidi che sono soggetti a trascrizione, producendo filamenti di mRNA omonimo che si accumulano nella cellula uovo in quella che sarà la parte anteriore dell'organismo. Si formano, così, l'asse antero-posteriore e, successivamente, gli assi dorso-ventre, destro-sinistro che danno indicazioni alle cellule sul luogo dove posizionarsi.
  2. Altri fattori di trascrizione stimolano la segmentazione dell'embrione: ognuno di essi svilupperà particolari caratteristiche nell'organismo adulto.
  3. A questo, ultimata la differenziazione base si procede con l'assemblaggio di strutture più specifiche: in particolare, l'attivazione di particolari geni, detti omeotici, promuove la formazione di determinate parti del corpo in determinati segmenti. Teniamo nota del fatto che questi ultimi contengono una sequenza, lunga circa 180 paia di nucleotidi, che è comune a tutti i geni omeotici dell'individuo e molto simile a quelle di omeogeni di altre specie: si chiamano homeobox e codificano proteine omonime in grado di regolare l'espressione di più geni contemporaneamente.
  4. Quest'ultima fase consiste principalmente la distinzione delle varie cellule in tessuti. Questo, in realtà, è un processo continuo che vede una cellula staminale di partenza, che è quindi totipotente (in grado di formare una qualunque cellula dell'organismo), continuare a duplicarsi: le cellule figlie perdono questa abilità piano piano, diventando pluripotenti (riescono a formare cellule specifiche per apparati e sistemi) nello stadio embrionale. Di queste ultime, però, rimangono solo delle tracce nel cordone ombelicale: infatti, già nello stadio fetale, le successive cellule figlie sono diventate multipotenti, se non unipotenti.
Differenziazione delle cellule staminali

Regolazione genica post-trascrizionale

Fino ad ora ci siamo occupati della regolazione dell'espressione genica a livello della trascrizione ma la sintesi proteica non finisce qui: dato che l'intero processo è supervisionato dall'operato dei geni regolatori, esistono controlli anche nelle fasi di maturazione del trascritto, traduzione e post-traduzione.
  • In particolare, abbiamo già accennato lo splicing alternativo per quel che riguarda la maturazione del pre-mRNA: significa che, una volta rimossi gli introni, gli esoni possono essere ri-legati in diversi modi per dare origine a proteine diverse pur partendo dall'informazione di un gene. Anche questo processo richiede, quindi, meccanismi di controllo a seconda di quale proteina necessita la cellula.
  • Nel caso della fase traduzionale, essa può essere sospesa, se l'mRNA è già presente nel citoplasma e non è necessaria l'ulteriore produzione di molecole, impedendo l'interazione tra ribosomi e RNA messaggero: questo avviene grazie alla modifica della sequenza leader dell'mRNA o grazie all'azione di particolari composti detti repressori traduzionali. 
  • Questi ultimi sono polimeri di varia natura, tra cui proteine, come la FMRP che opera all'interno delle cellule nervose, e molecole di RNA, quali i microRNA (miRNA) e i brevi RNA interferenti (siRNA, ossia short-interfering RNA). In particolare, questi ultimi agiscono sui frammenti di RNA messaggero giunti al termine del loro ciclo vitale o dannosi per l'organismo mediante una serie di processi che sono definiti nell'insieme RNA interference (RNAi); essa si svolge così:
  1. Il pre-miRNA e il pre-siRNA sono trascritti in una molecola a doppio filamento.
  2. Da esso, si separano dei filamenti singoli di siRNA o miRNA lunghi, in media, 22 nucleotidi che formano un complesso con altre proteine. 
  3. Un tratto di mRNA si lega col siRNA o col miRNA per complementarietà.
  4. A seconda del grado di complementarietà, il complesso multiproteico può inibire la traduzione (bassa complementarietà) o degradare il filamento di mRNA (alta complementarietà).
  • Il fatto che questi RNA siano costituiti da pochi nucleotidi è notevole e molto importante perchè essi possono anche essere riprodotti artificialmente in laboratorio, in modo tale da poter trovare cure per certe malattie dove alla base risiede la formazione di proteine anomale o RNA estraneo.
  • I controlli successivi alla traduzione coinvolgono la catena polipeptidica formatasi: una volta funzionale, essa è sottoposta a controlli (quali la permanenza nell'ambiente cellulare o la necessità del suo operato) mediante rottura della stessa o blocco temporaneo.

Regolazione genica eucariote: trascrizione

Il processo di trascrizione nelle cellule eucariote, nonostante presenti alla base della regolazione genica i processi procarioti (e quindi si riscontrano in tutti gli organismi la presenza di attivatori e repressori), è controllato da un numero di fattori molto più elevato per diversi motivi:
  1. Il DNA eucariote non presenta alcun operone perchè i geni strutturali sono tutti separati e necessitano meccanismi di controllo peculiari.
  2. Il promotore può essere lungo parecchie sequenze nucleotidiche.
  3. Il DNA può trovarsi in eucromatina ed eterocromatina a seconda del livello di spiralizzazione: quest'ultima, in particolare, non può essere trascritta.
  4. Ogni cellula appartiene ad un particolare tessuto e quindi un certo numero specifico di geni strutturali.
  • In particolare, gli ultimi due punti ribadiscono ulteriormente che le informazioni contenute in ogni singola cellula non sono utilizzate tutte contemporaneamente, ma che quelle non funzionali al suo scopo sono "silenziate": solitamente, questo perchè esse sono perennemente condensate in eterocromatina o perchè a quei geni è stato attaccato un gruppo metile che è in grado di inibire la trascrizione.
  • Per despiralizzare la cromatina, intervengono degli enzimi in grado di alterare la struttura nucleosomica: l'istone-acetiltransferasi, per esempio, agisce sugli istoni mediante l'aggiunta di un gruppo acetile che attenuano l'interazione col DNA.
L'azione dell'enzima istone-acetiltransferasi e l'eventuale rimozione del gruppo metile dal DNA sono il primo passo per permettere la trascrizione di un gene prima "silenziato"; la disattivazione di un gene avviene spesso mediante metilazione del DNA e la condensazione in eterocromatina.
  • Il promotore è suddiviso in 3 diverse regioni:
  1. Una sorta di sequenza-amplificatore, distante e lunga anche un centinaio di nucleotidi dal vero e proprio gene, è definita sito degli elementi regolatori: è la sede dei fattori di regolazione e si chiama enhancer se la proteina è un attivatore o silencer se questa è un repressore.
  2. Una particolare sequenza nucleotidica (5' - TATAAA - 3'), definita TATA box, è la regione che localizza il punto esatto dove può avvenire la trascrizione.
  3. L'ultima sequenza, il sito di inizio della trascrizione, è dove si inserisce la RNA polimerasi II per dare inizio alla trascrizione: dista circa 25 paia di basi azotate dopo il TATA box.
  • Ora, definiamo come promotore basale la macroregione composta da TATA box e sito di inizio
  • La trascrizione dell'mRNA avviene a seguito di certi processi che promuovono l'operato della RNA polimerasi II:
  1. La proteina "attivatore" si lega all'enhancer (sito degli elementi regolatori).
  2. Interviene un altro fattore di regolazione della trascrizione chiamato TFIID che si attacca al TATA box.
  3. Quest'ultimo, favorisce l'attacco della RNA polimerasi II al sito di inizio della trascrizione e il legame tra 5 fattori di regolazione, detti nell'insieme GTF (fattori di trascrizione generali), al promotore basale: l'insieme creatosi (promotore basale + RNA polimerasi II + GTF) è definito complesso di pre-inizio.
  4. Nel caso il sito degli elementi regolatori sia molto lontano dal promotore basale, il DNA si ripiega permettendo ad un'altra molecola, detta mediatore, di interagire sia col complesso di pre-inizio, sia con l'attivatore. Adesso la RNA polimerasi II procede con la produzione di un trascritto.
Transcriptional promotion by an enhancer
Promozione della trascrizione grazie all'intervento del mediatore